




 このページを印刷する
鳥取大学学術研究院工学系部門
古川 寛人 先生
松浦 和則 先生
古川 寛人 先生
松浦 和則 先生


エンベロープ型ウイルスであるコロナウイルスやインフルエンザウイルス、HIVは、ゲノム核酸がタンパク質集合体で覆われたヌクレオキャプシドが、エンベロープと呼ばれる脂質二分子膜で被覆されたナノ構造体であり、その表面に宿主細胞への感染や出芽に関する機能性膜タンパク質が提示されている1)。近年、エンベロープ型ウイルスを模倣した人工材料が開発されている。例えば、エンベロープを有さないアデノウイルスや、DNAオリガミにより構築された球状集合体を脂質二分子膜で複合化することにより構造安定化することが報告されている2, 3)。しかし、化学合成した自己集合性ペプチドと脂質二分子膜の複合体に膜タンパク質を搭載したエンベロープ型ウイルス模倣ナノ材料の創製は未開拓であった。
筆者らのグループは以前、天然の球状ウイルスであるトマトブッシースタントウイルス(TBSV)の正12面体内部骨格形成に関与する24残基β-Annulusペプチド(INHVGGTGGAIMAPVAVTRQLVGS)が水中で自己集合し、30-50nmの中空の人工ウイルスキャプシドを形成することを見出している4)。また、β-AnnulusペプチドのN末端側がキャプシド内部に、C末端側が外部に配向している特性を利用し、キャプシドのカチオン性内部へのDNA・mRNA・量子ドット・タンパク質などのゲスト分子の内包や、C末端修飾によるタンパク質・DNAアプタマーなどの機能分子の表面被覆にも成功している5-8)。さらに筆者らは最近、アニオン性人工ウイルスキャプシドとカチオン脂質二分子膜の複合化によりエンベロープ型ウイルスレプリカ(EVR)を創製した9)。本稿では、無細胞タンパク質合成系PURE systemを利用したギャップジャンクション形成膜タンパク質Connexin-43(Cx43)10)及びSARS-CoV-2由来スパイクタンパク質(S protein)11)を搭載したEVRの構築及び機能性評価について紹介する。
細胞間での情報伝達・分子輸送には様々なチャネル膜タンパク質が関与している。その中で、コネキシンは直径9nm程度の6量体を形成するチャネル膜タンパク質であり、細胞間においてコネキシン同士でギャップジャンクション構造を形成することで1kDa程度の小分子を細胞間輸送する役割を担っている12-14)。本研究では、Cx43を、無細胞タンパク質合成系であるPURE systemを利用して、EVR上への搭載と、Cx43間のギャップジャンクションを介した分子輸送を検討した(図1A)。EVR存在下でのリボソーム結合部位・T7プロモーター・Cx43発現配列を含むplasmid DNAを用いた無細胞タンパク質合成によりCx43搭載EVRを作製した。Cx43の発現は、ウエスタンブロットにより確認された。Cx43搭載EVRにAlexa Fluor 488標識抗Cx43抗体を添加して蛍光相関分光(FCS)測定を行ったところ、抗体のみの場合や、遊離のCx43に抗体を加えた場合よりも拡散時間の増大が確認された。2成分フィッティングにより、83%の10nm程度の抗体成分と17%の120nm程度のCx43搭載EVRと思われる成分が確認された。また、Cx43搭載EVRに抗Cx43抗体と金ナノ粒子標識二次抗体を添加し透過型電子顕微鏡(TEM)観察した。膜タンパク質未搭載EVRやCx43発現リポソーム上には金ナノ粒子はほとんど観察されなかったが、Cx43搭載EVRでは、球状集合体表面に多数の金ナノ粒子が観察された。興味深いことに、Cx43の発現量を増やした場合、Cx43間でギャップジャンクション構造を形成したTEM像が観察された(図1B)。さらに、Cx43搭載EVRが細胞上のCx43とギャップジャンクションを形成し、分子輸送が可能かどうか評価した。Cx43を発現しているHepG2細胞に蛍光色素(5-TMR)を内包したCx43搭載EVRを添加し、共焦点走査型レーザー顕微鏡(CLSM)観察を行った結果、細胞内部で5-TMR由来の蛍光が観察された(図1C)。一方、Cx43未搭載の場合は5-TMRの蛍光が殆ど観察されず、Cx43の有無により細胞内部の蛍光強度に有意な差が見られた。よって、Cx43が機能を保持した状態でエンベロープ上に搭載され、ギャップジャンクション構造を介して蛍光小分子が細胞内へ輸送されていることが示唆された。
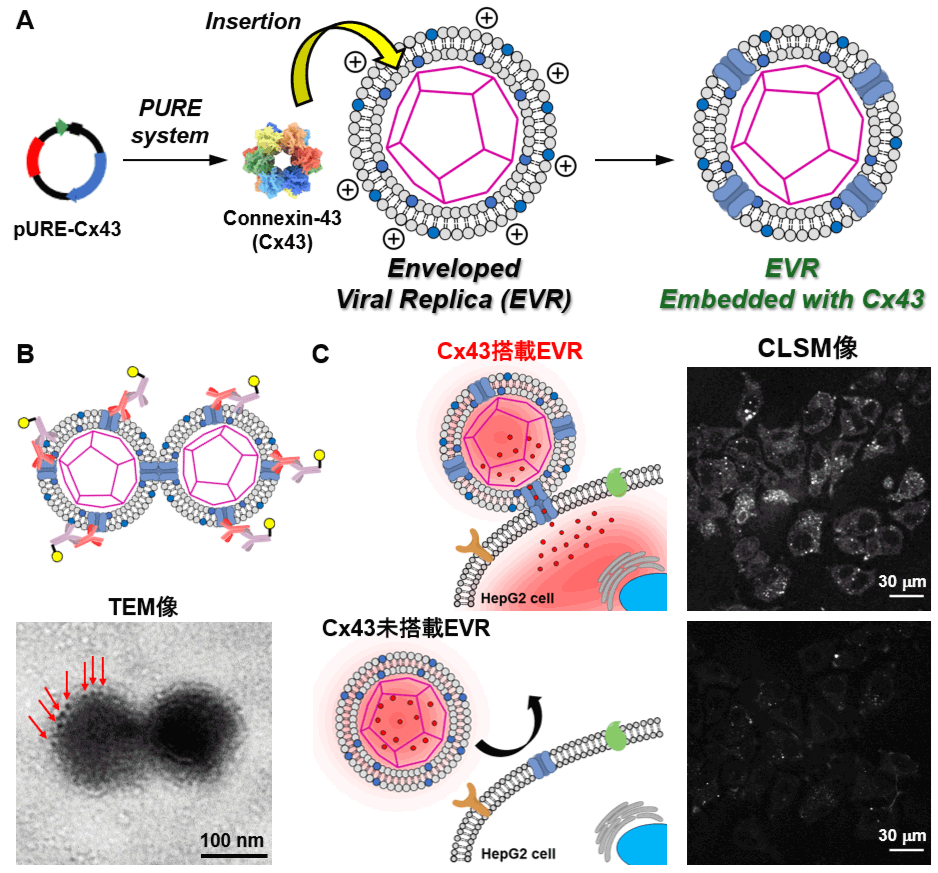
図1.
(A)ギャップジャンクション形成膜タンパク質Cx43搭載EVRの構築
(B)抗Cx43抗体及び金ナノ粒子標識抗体添加後のCx43搭載EVRのTEM像
(C)Cx43間のギャップジャンクションを介した細胞内への蛍光色素輸送の模式図とCLSM像
近年、世界的な感染爆発を起こしたエンベロープウイルスのSARS-CoV-2の感染メカニズムは、エンベロープ表面に提示されているS proteinが宿主細胞表面のアンジオテンシン変換酵素(ACE2)に結合することで細胞内部に侵入し、増殖する15)。近年、S proteinやそのReceptor Binding Domain(RBD)をフェリチンやde novoタンパク質集合体に提示したナノ構造体の開発が盛んに行われている16,17)。しかし、本来S proteinは脂質二分子膜上で安定に存在し、機能を発揮する膜タンパク質であるため、これらのナノ構造体は安定性・機能性の面で問題があることが予想される。また最近、S protein搭載リポソームの構築も報告されているが18)、S proteinがエンベロープに埋め込まれたエンベロープウイルスレプリカ構造は未開拓であった。
上述の膜タンパク質搭載EVRの構築技術を利用して、我々は最近、SARS-CoV-2のS proteinをエンベロープ膜に埋め込んだEVRを創製することに成功した(図2A)11)。まず、リボソーム結合部位・T7プロモーター・S protein発現配列(Wuhan-Hu-1)を含むDNA断片をPCR増幅し、EVR存在下でPURE SystemによりS proteinを無細胞合成させ、ウエスタンブロットにより発現確認した。発現後のEVRのTEM像では、100-200nmの球状集合体の表面に10-20nmの突起状構造が観察され、S proteinがエンベロープ膜に埋め込まれていることが示唆された(図2B)。抗スパイクタンパク質抗体と金ナノ粒子標識二次抗体存在下でのTEM像において、エンベロープ膜上に金ナノ粒子が多数観察されたことから、EVRへのS proteinの搭載が確認された。金ナノ粒子の個数を定量した結果、EVR1つあたり平均4.5±2.3個のS proteinが搭載していることがわかった。一方、S protein未発現EVRや、S protein発現リポソームの場合はほとんど金ナノ粒子の結合が観察されなかった。おそらく、リポソームと比較しEVRには脂質パッキングの欠陥が存在するため、より多くのS proteinが搭載できたと思われる。構築したS protein搭載EVRがSARS-CoV-2と同様にACE2と強く結合するかどうかを、水晶発振子マイクロバランス(QCM)を用いて評価した。QCMの金電極上にNi-NTA錯体を修飾し、His-tag ACE2を固定化した。これにS protein搭載EVRを添加すると、固定化ACE2への結合に伴う振動数の大きな減少(重量増加)が確認された(図2C)。一方、S proteinのみを添加した場合は振動数減少が小さく、S proteinを搭載していないEVRを添加した場合は殆ど振動数減少が観測されなかった。結合した重量のS protein濃度依存性より、S protein搭載EVRとACE2の解離定数はKd=1.63±0.29nMであるのに対し、S proteinのみではKd=8.33±5.89nMであることがわかった。おそらく、エンベロープ上にS proteinが多数提示されているため、多価効果により結合親和性が高くなったためと考えられる。これらの値は、SARS-CoV-2のS proteinとACE2の結合親和性に匹敵するものであり、レプリカであっても十分に細胞表面の受容体に結合する可能性が示唆された。そこで実際に、EGFPで標識した膜局在ACE2(mlACE2-EGFP)を強制発現させたHeLa細胞を作製し、そこに蛍光標識したS protein搭載EVRを添加して、CLSMを用いて細胞の蛍光像を観察した。その結果、mlACE2を発現させた細胞の表面や内部でのS protein搭載EVRの局在が観察された(図2D)。一方、S protein未発現EVRではそのような局在は殆ど観察されなかった。また、mlACE2が発現していない細胞では、S protein搭載EVRの結合は殆ど観察されなかった。さらに、抗S protein抗体により、S protein搭載EVRのmlACE2発現細胞への結合が阻害された。以上の結果から、S protein搭載EVRは細胞膜上のACE2に強く結合し、細胞内へ侵入する能力を有していることが実証された。
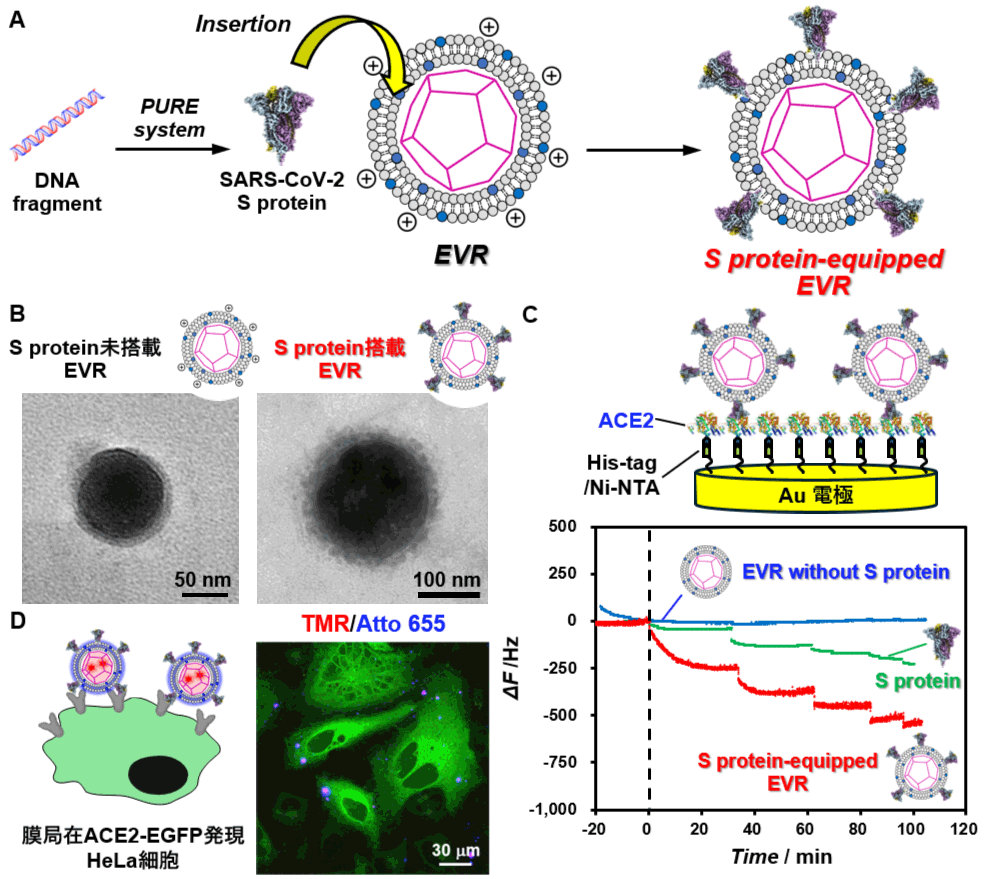
図2.
(A)SARS-CoV-2 S protein搭載EVR構築の模式図
(B)S protein搭載及び未搭載EVRのTEM像
(C)水晶振動子マイクロバランス(QCM)によるS protein搭載EVRとACE2受容体の結合解析の模式図及び振動数の経時変化
(D)TMR/Atto 655標識S protein搭載EVRと相互作用した膜局在ACE2-EGFP発現細胞のCLSM像
以上のように筆者らは、膜タンパク質を含む天然のエンベロープ型ウイルスが有する複雑な構造を模倣して、完全化学合成により構築した人工ウイルスレプリカと無細胞合成系により膜タンパク質搭載EVRを人工構築することに成功した。現在、インフルエンザウイルスのヘマグルチニンを搭載したEVRの創製も検討している。これらの材料は感染・増殖・毒性発現・伝播・変異のメカニズムを解析するための分子ツールとして有用であり、将来の感染症パンデミックに対する次世代ワクチンや抗ウイルス薬の開発のための基礎技術を提供していきたい。
商品は「研究用試薬」です。人や動物の医療用・臨床診断用・食品用としては使用しないように、十分ご注意ください。
※ 表示価格について
※ CAS Registry Numbers have not been verified by CAS and may be inaccurate.
お問い合わせ
商品に関するご相談・お問い合わせ
受付時間:平日 (9:00~17:30)



© COSMO BIO